Este blog está asociado a las páginas web de las asignaturas de Microbiología del Grado de Biotecnología y del Grado de Ciencias Ambientales de la UMH.


Inicialmente era usado para publicar los resúmenes divulgativos de los trabajos presentados en clase, pero ahora se va a usar la cuenta de twitter para eso. Así que este blog va a permanecer como un espacio para la reflexión sobre el funcionamiento de la asignatura.


También podrás encontrar diversas páginas y blogs relacionados con el mundo de la Microbiología. El material que se presenta en ellos puede ser utilizado en clase.


viernes, 25 de mayo de 2012

Mejora de la producción de metabolitos secundarios en Streptosporangium


Improved secondary metabolite production in the genus
Streptosporangium by optimization of the fermentation
conditions

Christoph Pfefferle, Uwe Theobald, Hanne Gürtler, Hans-Peter Fiedler
Journal of Biotechnology 80 (2000) 135–142


Artículo original


Comentario realizado por:

Marina Serrano Maciá
Alicia Serrano Alcalá
María Dolores Olivares Vicente
Patricia Ros Tárraga
Adrián Cabezas Fuster


INTRODUCCIÓN: ESTADO ACTUAL DEL TEMA
La obtención masiva de metabolitos secundarios como antibióticos se necesaria debido al aumento de patógenos resistentes, a la aparición de enfermedades nuevas y a la toxicidad de los compuestos utilizados actualmente. Por lo tanto, se han utilizado varias estrategias para encontrar nuevos fármacos bioactivos y para explotar la producción de los ya conocidos en géneros no tan bien estudiados..
Para ello se ha trabajado con dos géneros estrechamente relacionados: Streptomyces y Streptosporangium. Streptomyces  debido al hecho de que sólo una pequeña parte de su capacidad biosintética se utiliza hoy en día y Streptosporangium (perteneciente al grupo de los actinomicetos raros), debido a que es un género desconocido y por su escasa producción de antibióticos y baja productividad.

HIPÓTESIS DE TRABAJO
¿Es Streptosporangium un candidato para producir metabolitos secundarios de interés bajo las condiciones de fermentación de Streptomyces?


DISEÑO EXPERIMENTAL Y RESULTADOS
Ø  En primer lugar se cultivaron cepas de Streptosporangium partiendo de las condiciones óptimas de Streptomyces en fermentaciones discontinuas:
·         Agitación a 500 rpm
·         Volumen de aireación 1  (volumen gas partido volumen de líquido de trabajo y minuto)
·         Turbina de Rushton


Aquí podemos observar que, manteniendo la presión de oxígeno constante durante el proceso, el crecimiento celular comienza a partir de las 50 horas y, tras 5 días (120h), alcanza la fase estacionaria, donde comienza a producir el metabolito secundario. Finalmente se observa que la concentración final de producto es muy baja.


Ø  En los siguientes experimentos se variaron las condiciones de fermentación para maximizar la productividad, que fueron la velocidad de agitación de 500 a 750 rpm y diferentes volúmenes de aireación.

El pH, la presión de oxígeno y el crecimiento celular se mantienen constantes (por ello no se representan en la gráfica), pero la producción de metabolito secundario experimenta un máximo a 4  y va disminuyendo a valores superiores.

Ø  A continuación se utilizaron diferentes sistemas de agitación (750 rpm, 4  y presión de oxígeno constante).

Aquí podemos observar que se obtiene una mayor producción con la turbina marina que con la turbina Rushton, empleada en los experimentos anteriores. Este resultado se confirma con los dato de la siguiente tabla:

A partir de la tabla se puede apreciar que se consigue 18 veces más de producto al optimizar:
-          Velocidad de agitación
-          Volumen de aireación
-          Sistema de agitación


Ø  A continuación se llevó a cabo un experimento adicional para comprobar si realmente era el oxígeno el gas que influía en la producción de una mayor cantidad  de metabolito secundario (porque los gases en general pueden afectar a la variabilidad del metabolito).


En la gráfica se observa que la mayor producción de metabolito secundario se produce con el mayor suministro de oxígeno.


Ø  Finalmente, se realizó un experimento con una cepa de Streptomyces utilizando las mismas condiciones óptimas de Streptomyces, pero utilizando diferentes volúmenes de aireación.

En la gráfica se observa un máximo de producción a 0.5  (bajas tasas de aireación). 
Se pretenden confirmar las condiciones óptimas de Streptomyces y confirmar que son completamente diferentes a las del género Streptosporangium, pudiéndose observar que Streptomyces tiene producción óptima a bajos volúmenes de aireación; mientras que Streptosporangium la tiene a elevados volúmenes (en este caso fue a 4). 


CONCLUSIÓN
Para mejorar la formación de metabolito secundario es necesaria la optimización de las condiciones de fermentación.
Se demostró que el oxígeno tiene un gran impacto sobre el rendimiento de producción de metabolito secundario variando la velocidad y sistema de agitación y el volumen de aireación que mejoraban su transferencia y suministro hacia las células, por lo que se concluyó que el tamaño de la burbuja influía en la producción de metabolitos secundarios. Además, mediante los experimentos realizados se obtuvieron las condiciones óptimas de Streptosporangium, que eran una velocidad de 750 rpm de agitación, una turbina marina que disminuía el efecto de cizallamiento sobre las células en suspensión y un volumen de aireación de 4 . En estas condiciones se obtiene 18 veces más de producto que utilizando las condiciones iniciales correspondientes a Streptomyces, que son totalmente diferentes, como se demuestra en el último experimento.
            Por otra parte, debido a la optimización de las condiciones de fermentación, se consiguieron aislar nuevos metabolitos secundarios en diversos géneros de Streptomyces.
            El proceso de optimización sirve para aumentar la producción de los metabolitos ya conocidos de ambos géneros y permitir el descubrimiento de nuevos, ya que previamente su producción basal era tan baja que no se podía detectar su presencia.
            Una vez obtenidos se procederá a su estudio para conocer su utilidad, por ejemplo, como fármaco.

jueves, 24 de mayo de 2012

Optimización del proceso de obtención de bioetanol a partir de la paja del arroz.


Realizado por Francisco García Asencio, Daniel Carrillo Bautista, Alejandro Pardines Juan, Carla Crespo Quiles y Marina Sánchez Soler


Introducción: Estado actual del tema a presentar

En la actualidad numerosos centros de investigación están desarrollando métodos para optimizar la producción de bioetanol a partir de la paja del arroz. Esto surge a partir de la necesidad de la sustitución de los combustibles fósiles tradicionales por una fuente de combustible más sostenible.

La producción de bioetanol a partir de la paja del arroz se lleva a cabo por la fermentación alcohólica de la glucosa y la xilosa, azúcares que se obtienen a partir de la hidrólisis de lignocelulosa, presente en la pared celular de las plantas.[1]

Hasta el momento este proceso se llevaba a cabo a partir de la fermentación conjunta de los monosacáridos nombrados mediante la aplicación simultánea de diversos microorganismos. Sin embargo, al llevar a cabo el proceso salía a la luz un problema: el rendimiento a partir de la xilosa era muy bajo, esto sucede porque existe competencia de los microorganismos por el oxígeno.[2]

Hipótesis de trabajo

En este proyecto se propone una alternativa a la utilización de microorganismos genéticamente modificados que son una fuente de preocupación social.
Se utilizan los microorganismos Saccharomyces cerevisiae y Picchia Stipitis para la fermentación secuencial de glucosa y xilosa respectivamente. De esta forma solucionaríamos el problema del rendimiento. Además, la hidrólisis de la lignocelulosa se lleva a cabo simultáneamente con la fermentación para reducir el tiempo del proceso, hecho que produce un abaratamiento de los costes.
 Previamente a la inoculación1 de Picchia Stipitis se han de inactivar las células2 de S. cerevisiae para evitar competitividad entre ambos, aumentando así la eficiencia de la obtención de etanol a partir de xilosa y evitando además la acumulación de xilitol como producto no deseado.

Diseño experimental y resultados

La paja de arroz fue previamente tratada para crear un medio de cultivo adecuado para los microorganismos utilizados, P.stipitis y S.cerevisae. Como hemos mencionado anteriormente, es necesario inactivar S.cerevisae para obtener una mejor producción de etanol a partir de la fermentación de la xilosa por P.stipitis. A continuación, exponemos los cuatro experimentos que se desarrollaron con el fin de observar los efectos de la inactivación de S.Cerevisiae:
En el experimento número 1, inactivamos S.cerevisiae manteniéndola a 50ºC durante 6 horas y posteriormente inoculamos P.stipitis.
En el experimento 2, inoculamos P.stipitis al mismo tiempo que en el experimento anterior pero sin la previa inactivación de S.cerevisiae.
En el experimento 3, solo se inoculó S.cerevisiae sin ser inactivada, y posteriormente se añadió agua destilada que sustituiría a P.stipitis.
Por último, en el experimento 4, se realiza la inactivación de S.cerevisiae en las mismas condiciones que en el experimento 1, a 50ºC durante 6 horas, sustituyendo la inoculación de P.stipitis por agua destilada


Gráficas concentración/tiempo de glucosa, xilosa, etanol y xilitol en los 4 distintos experimentos:
Experimento 1: se observa en la gráfica que la concentración de xilosa desciende más rápidamente que en el resto de experimentos, debido a que S. cerevisiae ha sido inactivada, por lo que no establecerá competencia con P. stipitis, pudiendo ésta así sintetizar etanol de un modo más eficiente (obtenemos mayor concentración de etanol), disminuyendo la concentración de xilosa más rápidamente.
Experimento 2: se observa que la concentración de xilitol es mayor que en el resto de experimentos, debido principalmente a que la enzima que degrada este compuesto, la xilitol deshidrogenasa, funciona con oxígeno. Por consiguiente, la acción de esta enzima será menor, al tener menos oxígeno, ya que S. cerevisiae no ha sido inactivada.
Experimento 3: al no inocular P. stipitis, se observa como casi no disminuye la concentración de xilosa.
Experimento 4: se observa que la  concentración de glucosa y xilosa aumentan en el tiempo, ya que no hay nadie que las degrade. Sin embargo, cuando se ha inactivado S. cerevisiae, no hemos eliminado toda la población, una pequeña fracción sobrevive, por lo que pasado un tiempo esta población provocará la disminución en la concentración de glucosa. Contrariamente, la concentración de xilitol será muy baja, ya que no habrá ningún microorganismo que degrade la xilosa.


Fermentación de la glucosa y de la xilosa mediante S.cerevisiae y P. stipitis


En vista de los resultados anteriores se decidió llevar la investigación por el camino del primer experimento, repitiendo éste, pero en un fermentador de mayor tamaño.
Se utilizó un  medio sintético (compuesto por 50,4 g/l de glucosa, y 20,7 g/l de xilosa) para comprobar el efecto de inactivación de S. cerevisiae en la fermentación de la xilosa mediante P.stipitis. En primer lugar, se inoculó S.cerevisae en condiciones anaeróbicas a 30ºC durante 8 horas para que se produzca la fermentación de la glucosa. A continuación, se somete a las células a 50ºC durante 6 horas con el fin de inactivarlas. Una vez inactivadas se enfría el medio hasta 30ºC y se inocula la P.stipitis. Por último, se produjo la fermentación de la xilosa realizada por P.stipitis a 30ºC. Periódicamente se tomaron muestras para analizar la concentración de levaduras, azúcares, etanol y otros compuestos (como se muestra en la fig. 2).
Conclusión

Por la inactivación de las células S. cerevisiae antes de la inoculación del P. stipitis, se produjo un 23.0% más de etanol así como un 42.4% menos de xilitol. Al mismo tiempo, casi toda la xilosa (95.8%) fue fermentada. Por lo tanto los resultados de esta investigación indicaron que simplemente inactivando S. cerevisiae, la fermentación de la xilosa podría mejorarse considerablemente y el tiempo de fermentación podría reducirse también notablemente. Tras la inactivación de las células de S.cerevisiae se obtuvo un incremento en la producción de etanol, alcanzando 31 g/L de etanol en 36 horas (resultado que iguala en un 84% las producciones teóricas).


1: Inocular: Introducción de las células en el medio.
2: Inactivar las células: reducir su número hasta que su presencia  sea insignificante 


miércoles, 23 de mayo de 2012

Análisis comparativo del genoma de los hongos termófilos degradadores de biomasa Myceliophthora thermophila y Thielavia terrestris

     Un gran desafío en la producción de biocombustibles a partir de la degradación de biomasa (celulosa, hemicelulosa y otros polisacáridos) es la búsqueda de enzimas cuya actuación sea rápida y eficiente.

     Actualmente, las celulasas y hemicelulasas mejor estudiadas son producidas por especies mesófilas como Trichoderma, Aspergillus y Penicillium, cuyo crecimiento óptimo se da en un rango de 40 a 50 ºC. Sin embargo, a estas temperaturas las reacciones de sacarificación e hidrólisis requieren tiempos largos, durante los cuales el reactor puede contaminarse.

     Con el objetivo de evitar este problema, una solución sería incrementar la temperatura para aumentar la velocidad de la reacción hidrolítica y, de este modo, disminuir el riesgo de contaminación. Sin embargo, para poder hacer esto son necesarias enzimas termoestables que provengan de hongos termófilos y sean capaces de resistir altas temperaturas. A pesar de que las enzimas de organismos termófilos presentan una actividad celulítica mayor, la cantidad de enzimas extracelulares producidas por estos seres es menor que la de mesófilos.

Distinción entre hongos termófilos y mesófilos

     Por todo lo comentado anteriormente, se realiza a lo largo del artículo un análisis comparativo entre dos especies termófilas, Thielavia terrestris y Myceliophtora thermophila, y una serie se experimentos en los que: a) se intenta caracterizar a los hongos termófilos (saber qué les distingue de los mesófilos) y b) se compara la actividad enzimática de los hongos mesófilos y termófilos al actuar sobre unos sustratos determinados.

     En la primera serie de experimentos que se realizaron, se trató de distinguir termófilos de mesófilos a nivel de ADN, de aminoácidos y de procesos metabólicos. 

     De esta forma, a nivel de ADN se investigó la posible relación entre el contenido del par de bases GC y la termofilia, ya que este par de bases presenta tres puentes de hidrógeno frente a los dos que tiene el par AT. Se observó que el genoma de organismos termófilos presentaba un menor contenido GC que el de mesófilos. Sin embargo, había un mayor contenido GC en regiones codificantes de termófilos que en las regiones codificantes de mesófilos, concretamente en el tercer nucleótido de cada codón. Por otro lado, el contenido de este par de bases no parecía tener ninguna relación con la adaptabilidad térmica en procariotas. 

     En cuanto a nivel de aminoácidos, se trabajó en la búsqueda de posibles firmas que estuviesen relacionadas con la termoestabilidad. Se pudo observar como el motivo “IVYWREL” sí estaba implicado en procariotas termófilos. Sin embargo, estas “firmas” no suponían ninguna diferencia entre hongos filamentosos mesófilos y termófilos.

     Finalmente, se investigó la posible relación entre la capacidad de soportar altas temperaturas y algunos procesos metabólicos como la biosíntesis de membrana, estructura y modificación de la cromatina, el metabolismo de la pared celular del hongo y heat shock proteins (HSP), aunque no se encontró nada que marcara una diferencia entre mesófilos y termófilos.

     En otra línea de experimentos completamente diferente, se pretendió encontrar el origen de la aparición de los hongos termófilos entre los ascomicetos mediante una serie de estudios taxonómicos. Sin embargo, se observó que no existe ninguna relación filogenética, sino que dichos hongos aparecen aislados en todo el Phylum.

Enzimas involucradas en la degradación de biomasa

     Las principales enzimas encargadas en la degradación de biomasa vegetal utilizadas por hongos son las CAZymes, un conjunto de enzimas de diferentes clases y familias que catalizan la ruptura, biosíntesis y modificación de glicoconjugados y polisacáridos.

     Al estudiar como se desenvolvían M. thermophila o T. terrestris en cultivos sobre extractos vegetales, se observaba un incremento en la síntesis de CAZymes, en concreto de GHs y PLs.

     - Glicósidos hidrolasas (GHs): llevan a cabo la hidrólisis de enlaces glicosídicos con un máximo de actividad a pH ácido. T. terrestris produce en mayor cantidad este grupo enzimático; por tanto, su crecimiento óptimo será en medios ácidos.

     - Polisacáridos liasas (PLs): su función es escindir enlaces glicosídicos (1,4). Su máximo de actividad es a pH neutro – básico. M. thermophila produce principalmente esta clase de enzimas, por lo que un medio básico-neutro será el idóneo para su crecimiento.

    Al analizar las proteínas activas en la degradación, se observaba una clara expresión de la familia GH61. Esta familia enzimática se encarga de la degradación de polisacáridos complejos y recalcitrantes, con principal acción sobre la lignocelulosa.

     La lignocelulosa es un polímero de celulosa y hemicelulosa unido fuertemente a lignina, responsable de la rigidez de las paredes celulares vegetales y que supone una de las mayores fuentes de carbono renovables para la producción de biocombustible. La importante cantidad de polisacáridos derivados de la hidrólisis de la lignocelulosa, se utiliza, mediante fermentación, para la producción de bioetanol. El problema es que los robustos enlaces del complejo no favorecen la acción de las hidrolasas de glicósidos utilizadas comúnmente y por ello la familia GH61 compone un conjunto de enzimas de gran interés industrial.

Perfiles de transcripción en sustratos de biomasa

     También se hizo una comparativa entre lo que ocurre durante el crecimiento de los hongos en glucosa (sistema control) y en dos cereales: la cebada (modelo usado para las monocotiledóneas) y alfalfa (modelo usado para las dicotiledóneas).
  
Expresión de enzimas en diferentes sustratos
    
     En cuanto a las enzimas que modifican la pared (GH16, GH17 y GH72) se pudo observar que se expresaban de igual manera tanto en glucosa como en ambos cereales. Por el contrario, en  referencia a las enzimas que destruyen la pared, se daba expresión tanto en alfalfa como en cebada, pero no en glucosa. 

     Siendo los componentes fundamentales de la cebada, la celulosa y la hemicelulosa, se vio que los genes de los enzimas que se inducían en este cereal estaban relacionados con la composición de dicho sustrato, de manera que se encontraba una alta cantidad de enzimas celulolíticas y xilanolíticas, además de arabinasas y enzimas pectinolíticas, con una disminución progresiva en estas últimas.

     En cuanto a la alfalfa, formada predominantemente por pectina y xilano, se ha descubierto que los genes de los enzimas que se inducen en dicho cereal no están relacionados con la composición de éste. De esta manera, las enzimas xilanolíticas permanecen a un bajo nivel, tanto en T. terrestris como en M. termophila; y en las liasas de pectina, aunque sí hay un incremento en M. termophila, no se denota un aumento en T. terrestris debido a que la degradación de la pectina se hace por medio de una ruta alternativa, con la actividad hidrolítica de la enzima GH28.

     Tras varias investigaciones, se llegó a la conclusión de que los hongos termófilos degradaban la celulosa a un ritmo mayor que los mejores productores de celulasas dentro del grupo de mesófilos (por ejemplo, T. ressei). Teniendo en cuenta que la temperatura óptima de degradación de biomasa de enzimas de termófilos está en un rango de 55 ºC a 70 ºC, se esperaba, por tanto, que a altas temperaturas, los termófilos degradasen más rápidamente.


     Se llevaron a cabo varios experimentos sobre alfalfa para confirmar este hecho, utilizando enzimas termófilas (de M. termophila, T. terrestris) y enzimas mesófilas (de C. globossum y T. ressei). En cuanto a las enzimas de las últimas, se obtuvo una temperatura óptima de hidrólisis a 50 ºC en T. ressei y una actividad óptima de degradación en un rango de temperatura entre 30-60 ºC en C. globossum. En referencia a los organismos termófilos, además de obtener una mayor concentración de azúcares, se observaron dos picos de temperatura óptima, uno a 40º y otro a 60º.

     Se planteó como hipótesis a estos resultados la posibilidad de que los termófilos tuvieran diversas enzimas degradadoras de biomasa, algunas de las cuales tuvieran una temperatura óptima de actuación a 40 ºC y otros a 60 ºC. Se contrastó dicha hipótesis clonando 7 xilanasas (termófilas) en Aspergillus niger (mesófilo) y comprobaron que, efectivamente, las temperaturas óptimas de actividad estaban en un rango de entre 45 ºC y 70 ºC.

     En conclusión, se pudo afirmar que los organismos termófilos (M. termophila y T. terrestris) poseían diversas actividades enzimáticas para la degradación de polisacáridos en la pared celular de las plantas y además contaban con un repertorio de enzimas que les permitía hidrolizar biomasa en un amplio rango de temperaturas, posiblemente motivo por el cual estos organismos son ubicuos.

Uso potencial del ciclo sexual para el desarrollo de estirpes

     Otro estudio que se hizo estuvo basado en el potencial del ciclo sexual para crear cepas mejoradas. Para ello se llevaron a cabo cruzamientos sexuales poco comunes entre hongos destinados a la bioproducción (barajeo de genomas, mutagénesis clásica…), sobre todo con M. termophila, destacando aquéllos donde intervenían los genes del apareamiento (mating genes), los cuales tenían un papel esencial en la reproducción sexual de ascomicetos. El problema fue que los resultados obtenidos no fueron satisfactorios.  

     Aun así, actualmente se sigue trabajando en ello, ya que si se consiguieran resultados sería un gran éxito a nivel industrial debido a que podrían cruzar especies naturales y modificadas genéticamente para conseguir aumentar el rendimiento en la degradación de biomasa y así abaratar los costes en la producción de biocombustibles.

     Otra posibilidad que se está explotando también a día de hoy es la expresión de enzimas termófilas en huéspedes mesófilos; así se combinarían las ventajas de alta producción enzimática (mesófilos) con alta actividad hidrolítica (termófilos).


Referencia bibliográfica: Berka et al., Comparative genomic analysis of the thermophilic biomass-degrading fungi Myceliophthora thermophila and Thielavia terrestris

Realizado por: Ángela Cantos García, Ana García Pérez, Oriol Juanola Juárez, Oliver Pérez Howell, Diana Sáez Chica.

martes, 22 de mayo de 2012

Estudio de las condiciones óptimas para la obtención de biomasa con Chlorella vulgaris

La necesidad de agudizar el ingenio


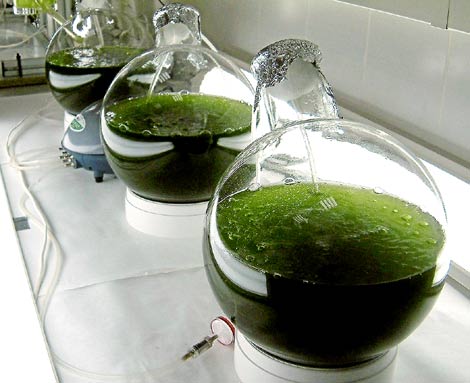
Probetas con microalgas cultivadas para biocombustibles por Biofuel Systems, en Alicante. 


En las últimas décadas se está observando un consumo abusivo, debido al crecimiento demográfico y a la mayor demanda, de los recursos naturales y un encarecimiento del precio de estos, esto unido a la producción de gases de efecto invernadero, que se generan en la combustión de estos recursos, es un gran problema en la sociedad. Por este motivo se ha planteado la necesidad de generar recursos alternativos renovables y biodegradables.
Las primeras alternativas que se generaron para solucionar este problema, fue el uso de biocombustibles de origen agrícola (aceites de soja, colza / canola, palma), pero este uso consume muchos recursos que pueden utilizarse para alimentación.

En Sudáfrica, uno de los países con mayor consumo de hidrocarburos y emisor de gases de efecto invernadero, se aisló de un lago de agua dulce (en la provincia de KwaZulu-Natal), un alga unicelular capaz de producir gran cantidad de lípidos en su interior, y fue identificada, mediante el análisis por PCR del ADN, como Chlorella vulgaris.

Recientes estudios demuestran que la producción de biomasa de microalgas, es un recurso que puede satisfacer la demanda mundial de combustible, además de existir más 40.000 especies diferentes capaces de producir y almacenar grandes cantidades de lípidos en su interior, tienen gran adaptabilidad para crecer, ya que se pueden cultivar en terrenos indeseables, requieren menos recursos y no necesitan suelo agrícola,  también tienen rápidas tasas de crecimiento, no dependen de las condiciones ambientales (lluvias, estaciones, latitud), y son de fácil crecimiento en biorreactores.

En la producción de biomasa de algas es necesario elegir la cantidad y calidad del aceite para la producción de los biocombustibles adecuados. Por esto, el estudio se centra en una cepa de microalgas (Chlorella vulgaris), para diseñar la forma más efectiva de producción de biomasa para biocombustible. Para ello, se les sometió a los cultivos, a variaciones en las concentraciones de CO2 y nutrientes (nitratos y fosfatos), estudiando el comportamiento térmico de la biomasa durante la pirólisis por TGA (análisis gravimétrico térmico), y determinar la mejor intensidad de luz requerida para aumentar la producción de biomasa utilizando la técnica denominada PAM (basada en el análisis de la extinción de fluorescencia de la clorofila).
Se determinó que el mejor medio de cultivo para la producción de biomasa de Chlorella vulgaris es el BG-11 (en laboratorio).


Para un óptimo rendimiento del cultivo hay que tener en cuenta la intensidad de la luz, siendo ésta óptima entre 150-350 μmol de fotones m-2 s-1 (Detectada por PAM).

La cepa estudiada puede tolerar una concentración de CO2 hasta un 4%, concentración a la cual se obtiene el mayor rendimiento de crecimiento de biomasa. Por encima de este nivel hay un efecto tóxico del CO2 por la disminución del pH provocada por el aumento de la concentración del ácido carbónico que se produce.El rango de pH óptimo oscila entre 7.5 y 8.0.

El nitrato y el fosfato tienen un papel principal en el crecimiento de la cepa como nutrientes. En un medio rico en nitratos (concentración óptima 5gl-1) se produce un crecimiento máximo. Aunque el fosfato intracelular es suficiente para las primeras divisiones, se obtiene un mayor rendimiento a una concentración de 0,04gl-1.

En el análisis gravimétrico térmico en atmósfera de nitrógeno (TGA en condiciones anóxicas), se determinaron 3 etapas diferentes según se aumentaba la temperatura:

Volume 111, Issue 3, March 2011, Pages 377–382
Primera etapa (inicio-230ºC): pérdida ligera de peso de la biomasa debida a la eliminación de agua.

Segunda etapa (230ºC-350ºC): proceso de pirólisis, este se basa en la descomposición de triglicéridos y otros compuestos orgánicos en moléculas más simples (como alcanos, alquenos y sustancias aromáticas). Estos productos simples se pueden transesterificar, modificar químicamente y así producir el biodiesel. En este paso se produce la pérdida de peso máximo.

Tercera etapa (350ºC-800ºC): pérdida de peso lenta y continuada debido a que se produce la descomposición casi total de la biomasa.


Con este procedimiento se evita, tener que romper las paredes celulares de las microalgas (paso crítico en otros métodos de extracción).

El contenido de lípidos máximo obtenido fue del 21% del peso seco en condiciones óptimas con las que se obtiene el mayor crecimiento de la biomasa y hasta un 40% en condiciones de estrés.

Pero, queda aún mucho por investigar hasta que se puedan obtener alternativas económicamente viables.


por Eva M. Soriano, Eva M. Brú, Anja Holz, Miguel Sánchez, Malva Puchades.

Referencia: Bhola et al. 2011, Effects of parameters affecting biomass yield and thermal behaviour of Chlorella vulgaris. Journal of Bioscience and Bioengineering.


lunes, 20 de junio de 2011

Resistencia a los antibióticos


Por Abbas Haway Caballero, Marlys Cabeza Moreno, Raquel Garcerán Olivares, César Sánchez Fernández.
1º Curso Grado en Ciencias Ambientales.

Los antibióticos son sustancias químicas producidas por un ser vivo que impide el crecimiento de cierta clase de microorganismos sensibles. Se utilizan para tratar infecciones causadas por gérmenes y se aplica tanto en la medicina humana como en la animal y en la horticultura.

Tienen una amplia diana de acción, afectan a la replicación del DNA, su transcripción y su posterior traducción a proteínas además de afectar a varios orgánulos de la célula.

La resistencia antibiótica es la capacidad de un microorganismo para resistir los efectos de un antibiótico. La resistencia se produce por mutaciones producidas por azar o por adquisición de nuevos genes.

En cuanto a los mecanismos de resistencia existen varios e incluyen : La degradación del antibiótico, Alteración de la permeabilidad de la membrana plasmática, modificación de la diana ,es decir el receptor, y finalmente las bombas de eflujo que expulsan el antibiótico de la célula.

Una Cepa es simplemente una variante fenotípica de una especie. En cuanto a cepas bacterianas resistentes a los antibióticos, se encuentran las cepas MRSA o las cepas NDM-1.

MRSA o methicillin-resistant Staphylococcus aureus. Es una cepa de Staphylococcus aureus que es resistente a los antibioticos betalactamicos. Esta cepa, no produce infecciones más graves sino resulta ser resistente a los antibióticos y cuesta curarlo.

NDM-1 o New Delhi metallo-beta-lactamase. Es una cepa bacteriana que es resistente a los Betalactamicos. La causa de la resistencia es la enzima NDM-1, que hace, a las bacterias que la poseen, resistentes a un gran número de antibióticos betalactámicos.

Como último punto se ha de señalar que en los hospitales se encuentran muchas cepas de MRSA y se teme que la información genética de la resistencia transferida entre las cepas pueda formar una superbacteria que sea resistente a todos los antibióticos.


domingo, 19 de junio de 2011

Armas biológicas


Por García Pérez, Ana; Pastor Fernández, Andrés; Pomares Pérez, Vicente; Rodríguez Alcocer, Eva María; Sáez Chica, Diana María

1º Curso Grado en Biotecnología


Armas biológicas, microorganismos o toxinas generalmente modificados por ingeniería genética con el objetivo de causar daños devastadores sobre una población, tanto a nivel inmunitario como económico, siendo de los mecanismos ofensivos más baratos de producir.

Según el microorganismo patógeno utilizado, las vías de propagación pueden ser mediante medio aéreo, alimentario y animal. Aunque algunos microorganismos pueden constituir una gran amenaza por si solos, para convertirse en armas biológicas deben de cumplir una serie de requisitos, como poder cultivarse en grandes cantidades, que se dispersen fácilmente, que pocas concentraciones del patógeno puedan causar la enfermedad, que sean estables en el ambiente, y que tengan estabilidad genética máxima para no retromutar a formas convencionales. Estas características se pueden conseguir mediante modificación genética, introduciendo en el microorganismo determinados genes portadores de resistencias o toxinas.

A lo largo de los años este tipo de armas han sido utilizadas en conflictos bélicos o ataques
bioterroristas como durante la 2º Guerra Mundial en la que la unidad 731 de Japón que experimento los efectos de estas armas con los prisioneros, o las cartas enviadas a distintas instituciones tras el 11S. En 1972 tras el acuerdo de Ginebra, se prohibió el almacenamiento y desarrollo de agentes biológicos con fines militares. Frente a estos ataques se deben desarrollar un conjunto de medidas para la prevención y actuación, una respuesta sanitaria rápida que se adecue a criterios sanitarios epidemiológicos suficientemente contrastados. El Centro para el Control y la Prevención de Enfermedades (CDC) ha adaptado un programa de respuesta a un ataque bioterrorista que se compone de 7 fases: planificación, detección, diagnóstico, investigación, tratamiento, comunicación y entrenamiento.

Entre las armas biológicas más devastadoras encontramos la peste, enfermedad causada
por la especie Yersinia pestis que llego a matar a un tercio de la población europea en el siglo XIV, el vector de esta bacteria es la pulga y según la vía de infección, se puede manifestar de tres formas: bubónica, septicémica y neumónica; el carbunco está causado por la bacteria Bacillus anthracis, se transmite por medio de heridas cutáneas, por inhalación o ingesta de carne contaminada, siempre procedente de animales, ya que es una zoonosis; la viruela causada por el virus Variola se transmite por contacto directo de una persona a otra o contacto con objetos contaminados por el individuo infectado. La diseminación de la viruela se detuvo hace tres décadas, pero debido a la patogenicidad de este virus aún quedan reservas en laboratorios controlados por si se produce alguna liberación deliberada. Otras enfermedades importantes pero menos dañinas son las producidas por Salmonella, Brucella, y Francisella.

Otra forma de utilización de las armas biológicas es el bioterrorismo agrícola. Aunque es considerado más benigno que un ataque directo a la salud humana, el agroterrorismo puede ser tan devastador como otras formas de terrorismo ya que afecta a las cosechas y al ganado con el objetivo de paralizar la economía y causar hambrunas y escasez.

En conclusión, la modificación genética puede tener efectos positivos pero también puede
desembocar en un uso inadecuado de determinados microorganismo.


Bibliografía

http://www.bt.cdc.gov/bioterrorism/overview.asp
http://www.bt.cdc.gov/agent/espanol/agentlist-category.asp
http://curiosidadesdelamicrobiologia.blogspot.com/search/label/Bioterrorismo
http://www.who.int/topics/anthrax/es/
http://www.who.int/features/2010/smallpox/es/
http://www.who.int/mediacentre/factsheets/fs267/es/index.html

Arqueas halófilas


Álvaro Herrero, José Miguel Crespo Poveda, Julieta Gabriela Hamzé Araujo, Lara Romo Metola, Sonia Alarcón Ferrer.
1º Curso Grado en Biotecnología

¿Existe algún organismo capaz de vivir en el Mar Muerto, un lugar conocido mundialmente por su alto contenido en sal y llamado así porque se creía que nadie era capaz de vivir en él? Hoy sabemos que sí, los llamados microorganismos halófilos (microbios amantes de la sal) pueden crecer en soluciones con altas concentraciones de sal. Existen diferentes grados de halofilismo: moderado (5-20% de sal) y extremo (20% hasta saturación). Cuanto mayor es la salinidad, menor es la diversidad. En concentraciones saturadas, sólo encontramos algunas especies de arqueas y unas pocas especies de bacterias, consideradas como extremófilas.

Estos organismos se encuentran, además de en el Mar Muerto, en otros ambientes hipersalinos, como el Mar Rojo, las salinas de Santa Pola o el lago salado de Utah (EE.UU.). Para sobrevivir en estas condiciones, las arqueas halófilas han desarrollado una serie de haloadaptaciones (adaptaciones a la elevada salinidad) de las que cabe que destacar la acumulación de solutos compatibles (K+), por lo que sus proteínas son ricas en aminoácidos ácidos. Otra característica importante de algunas de estas arqueas es que poseen dos tipos de membrana: la membrana roja y la membrana púrpura. Esta última contiene lípidos y bacteriorrodopsina, una cromoproteína capaz de utilizar la energía luminosa para bombear protones del interior al exterior celular. Por otro lado, la membrana roja contiene el resto de componentes de la membrana (lípidos, pigmentos carotenoides, ATPasa, cadena de transporte de electrones, otros mecanismos de transporte, halorrodopsina, etc).

Estas arqueas son muy importantes ya que poseen muchas substancias que pueden ser extraídas para su uso en la biotecnología actual. Algunas de ellas son: bacteriorrodopsina (está siendo investigada como elemento foto-activo para su uso en dispositivos ópticos), biopolímeros (que son utilizados para crear plásticos biodegradables, prótesis, gelificantes y emulsionantes), enzimas (hidrolasas e isomerasas, principalmente para su uso en la industria química y farmacéutica), halocinas (como la halocina H6, utilizada para proteger el tejido cardiaco cuando tiene lugar un infarto de miocardio), carotenoides (como el beta-caroteno, utilizado como complemento vitamínico, colorante de alimentos, etc).

Las arqueas halófilas más importantes pertenecen a los géneros Halobacterium que son aerobias obligadas y heterotrofas (poseen algunas aplicaciones como la transformación de agua salada en agua dulce o la obtención de bacteriorrodopsina), y Haloquadratum cuya característica más importante es la forma cuadrada de sus células (fueron descubiertos en 1980 cerca del Mar Rojo y la especie más conocida es Haloquadratum walsby, en honor a su descubridor Anthony Walsby).

Bibliografía

LOS MICROORGANISMOS HALÓFILOS Y SU POTENCIAL APLICADO EN BIOTECNOLOGÍA, Inmaculada Meseguer Soria.

http://www.brasdelport.com/aplicaciones.htm
http://curiosidadesdelamicrobiologia.blogspot.com/

Mycobacterium tuberculosis


Por : Patricia Ros Tárraga, Luz María Agulló Chazarra, Tamara Agulló Clement, Victoria Ferrández García, Cristina Desireé Sánchez Granados
1º Curso Grado Biotecnología.

La tuberculosis es una de las enfermedades más antiguas, destacando en el siglo XIX. Fue Robert Koch quien logró descubrir la bacteria causante de la tuberculosis. Esta bacteria es la Mycobacterium tuberculosis, que se caracteriza por ser un parásito intracelular de animales y humanos. Se encuentra dentro del grupo de las bacterias Gram +, con la diferencia de que posee muchos lípidos en su membrana (micolatos de trehalosa, constituyendo los TDM) y glucolípidos como PIM y LAM. Los TDM están formados por peptidoglicano, arabinogalactano y lipoarabinomanano, que provocan una serie de procesos que desembocan en la interrupción de la cadena respiratoria de las mitocondrias; los LAM provocan la supresión de la proliferación de los linfocitos T; y los PIM interrumpen el tráfico vesicular. En su genoma predomina la concentración de C/G, además de poseer muchos genes implicados en la lipogénesis y en la lipólisis y proteínas ricas en glicina. De esta manera, se relacionó la virulencia de la bacteria con su capacidad para formar lípidos.

Se trata de una enfermedad muy infecciosa que se transmite principalmente por el aire. Será la formación de fagolisosomas y la formación de óxido nítrico los que se encarguen de su eliminación. Suele permanecer en estado de latencia durante un periodo de tiempo. Entre las 2-12 semanas próximas, se dirige hacia la linfa de los ganglios. Una vez allí, los linfocitos T y los macrófagos forman granulomas para evitar que se puedan expandir por el resto de órganos. Puede que los bacilos se alimenten de los lípidos de estas células, escapen y se dirijan principalmente a la parte superior de los pulmones, donde se encuentra el surfactante. Además, puede afectar a otros lugares del organismo, como la base del cerebro, provocando una meningitis. La enfermedad se detecta en primer lugar por unas manchas blancas en radiografías del tórax y, posteriormente, se lleva a cabo la prueba de la tuberculina y un examen del esputo para asegurar la presencia de la bacteria. Por último, actualmente existe el Expert®X MTB/RIF que permite detectar la presencia del bacilo y si son o no resistentes a la rifampicina.

Esta enfermedad posee un tratamiento en el que se suelen administrar varios fármacos (2 o 3) para evitar que la bacteria se haga resistente a un fármaco determinado. Se suministran media hora antes de comer en una sola toma diaria durante unos 6 meses. Algunos de los fármacos que se administran son la isoniacida y la pirazinamida (para poblaciones metabólicamente activas y gérmenes en fase de inhibición ácida). Además, hay que tener especial cuidado con los efectos que pueden producir los fármacos, como toxicidad neurológica y ocular entre otros.

Actualmente tenemos el mayor número de muertos de la historia a causa de la tuberculosis debido a las resistencias a los fármacos. Actualmente existe una vacuna en investigación para su prevención, pero todavía es difícil evitar su transmisión. Para reducir la tasa de morbilidad se han propuesto una serie de estrategias, como suministrar buenas medicinas y promover la investigación.


Bibliografía


  • www.infecto.edu.uy/revisiontemas/tema24/introcursotbc.htmles.wikipedia.org/wiki/Historia_de_la_tuberculosis
  • www.monografias.com/trabajos5/tuber/tuber.shtml
  • books.google.es/books?id=GZ1-JI9AmI8C&pg=PA277&lpg=PA277&dq=...
  • http://www.higiene.edu.uy/cefa/Libro2002/Cap%209.pdf
  • www.msd.es/publicaciones/mmerck_hogar/seccion_17/seccion_17_...
  • www.infodoctor.org/salek/Tuberculosis.pdfwww.intramed.net/contenidover.asp?contenidoID=69200
  • www.cfnavarra.es/salud/anales/textos/vol30/sup2/suple8a.html
  • www.medicinabuenosaires.com/revistas/vol62-02/3/tuberculos.. ().
  • http://www.cepheidinternational.com/tests-and-reagents/ce-ivd-test/xpert-mtbrif/
  • http://moncayo.unizar.es/web/eventos.nsf/c9008b09760b0a1fc1256cef00001668/adadb47945985006c12576ee004cbe18?OpenDocume
  • http://www.elnuevoempresario.com/noticias_69348_casos-de-tuberculosis-en-el-mundo-el-mayor-de-la-historia.php

Penicilina


Por Pagés Berenguer, Joan, Palazón Miralles, Francisco, Pérez Córdoba, Daniel, Sansano Anaya, Mª Teresa, Segrelles i Bellá, Jordi
1º Curso del grado de Ciencias Ambientales


La penicilina es un antibiótico que encuentra su origen en un hongo denominado Penicillum notatum. Como antibiótico, la penicilina mata bacterias e impide que éstas continúen con su crecimiento, sin embargo, sólo tiene el poder de combatir a aquellos microorganismos patógenos que se encuentran en crecimiento y multiplicación, y no a esos que aún se encuentran en estado latente.

La penicilina y sus benéficas propiedades fueron descubiertas accidentalmente por Alexander Fleming en el año 1928 al darse cuenta de que la presencia de ciertos hongos en sus cultivos de bacterias inhibía su crecimiento. Para poder producir grandes volúmenes del antibiótico fue necesaria la cooperación y aportes de otros grandes bacteriólogos, también británicos, como Ernst Boris Chain y Howard Walter Florey. Todos ellos recibieron en 1945 el Premio Nobel de Medicina.

La estructura química básica de la penicilina consiste en un anillo de tiazolidina unido a un anillo β-lactámico, al que está unido una cadena lateral. Sustituyendo diferentes radicales en la posición R se obtienen diferentes penicilinas.

La penicilina inhibe la síntesis de la pared celular al interrumpir la reacción de transpeptidación necesaria para la biosíntesis del peptidoglicano. De este modo, actúa debilitando la pared bacteriana y favoreciendo la lisis osmótica de la bacteria durante el proceso de multiplicación. En las Gram positivas la pared celular tiene una única membrana (peptidoglicano), por lo tanto es más fácil de atravesar por los antibióticos. Sin embargo, las Gram negativas poseen una membrana externa, otra interna y una capa intermedia de péptidoglicano, más difícil de penetrar.

Es eficaz contra una gama amplia de enfermedades causadas por microorganismos como los pneumococos, los estreptococos, el gonococos, el meningococo, el clostridium de tétano, y la espiroqueta de la sífilis.

Uno de los compuestos más importante relacionado con la penicilina es la cefalosporina. Es una clase de antibiótico β-lactámico que al igual que la penicilina tiene un anillo β-lactámico y un anillo dihidrotiazínico, pero, a diferencia de ésta, deriva del ácido-7-cefalosporánico. Los mecanismos de acción de la cefalosporina son similares a los de la penicilina.

El mal uso de los antibióticos ha creado unas resistencias en los patógenos, que tienen una enorme capacidad de adaptación a circunstancias adversas y han desarrollado mecanismos de defensa ante agentes nocivos para su supervivencia frente a los antibióticos. Por un proceso de selección natural sólo sobreviven los que resisten al antibiótico, de una generación a otra éste deja de ser eficaz. Dependiendo de la patología y de las mutaciones de las bacterias se utilizan variantes de los β-lactámicos adaptándolos a las nuevas generaciones bacterianas.

Conclusión: La penicilina es muy importante para la salud.Millones de personas han salvado sus vidas, al tratarse con penicilina enfermedades para las que antes no existían tratamientos seguros ni curación. Debido a los continuos cambios microbianos, seguirá evolucionando y combatiendo las bacterias. En nuestras manos está el darle un buen uso.

Bibliografía

http://www.ferato.com/wiki/index.php/Penicilinahttp://www.uam.es/departamentos/medicina/farmacologia/especifica/F_General/FG_T62.pdf
http://es.wikipedia.org/wiki/Penicilina

Microbiología del Suelo


Por Sergio Gilabert Cerdà.
1º Curso de CC Ambientales


El suelo es la parte no consolidada y superficial de la corteza terrestre, biológicamente activa, que se desarrolla en la superficie de las rocas emergidas por la influencia de la intemperie y de los seres vivos.

La formación del suelo es un proceso en el que las rocas se dividen en partículas menores mezclándose con materia orgánica en descomposición. El lecho rocoso empieza a deshacerse por los ciclos de hielo-deshielo, por la lluvia y por otras fuerzas del entorno.

Cuando materiales geológicos recién formados empiezan a erosionarse, se inicia la colonización microbiana. En esta situación, el fósforo ya se encuentra presente en el suelo, pero el nitrógeno y el carbono surgen de procesos biológicos, siendo fijado el nitrógeno y el carbono atmosférico por numerosas cianobacterias.

Una vez formados, la mayoría de los suelos son ricos en nutrientes, que provienen de la materia orgánica, microorganismos y otros animales.

Podemos distinguir distintos tipos de suelos, como podzol (climas húmedos y fríos), chernozem (clima húmedo y veranos cálidos), laterita (regiones tropicales de clima cálido y húmedo), suelos desérticos y suelos geotérmicos híper termales, siendo cada uno típico de un lugar diferente, y diferenciados según su composición.

Los suelos son fuentes ricas en nutrientes. Éstos se localizan en la materia orgánica, los microorganismos, los insectos del suelo y otros animales. La población microbiana del suelo es aproximadamente de 108 a 109 células por gramo de peso seco de suelo.

Los microorganismos del suelo se pueden clasificar en dos grupos según su preferencia por la concentración de sustratos que precisan. Pueden ser microorganismos zimógenos, si se encuentran en los niveles con mayor concentración de nutrientes, y responden a la adición de sustratos fácilmente utilizables, o microorganismos autóctonos, si son propios de la zona y que tienden a utilizar materia orgánica nativa en gran cantidad.

Cabe destacar la presencia de bacterias, que desempeñan un papel fundamental en la degradación de los hidrocarburos, materiales vegetales viejos y humus, señalando la importancia del género Clostridium y de los microorganismos sulfatorreductores; así como de hongos, descomponedores de celulosa, lignina y pectina, en el suelo.

La rizosfera es una parte del suelo inmediata a las raíces donde tiene lugar una interacción dinámica con los microorganismos. Las características químicas y biológicas de la rizosfera se manifiestan en una porción de apenas 1 mm de espesor a partir de las raíces, es un zona donde se dan toda una serie de relaciones físicas y químicas que afectan a la estructura del suelo y a los organismos que viven en él, proporcionándole unas propiedades diferentes.

- Bibliografía:

INTERNET:
http://es.wikipedia.org/wiki/Podzol
http://es.wikipedia.org/wiki/Chernozem
http://www.isric.org/UK/About+ISRIC/Projects/Current+Projects/World+Reference+Base/Chernozem+pictures.htm
http://es.wikipedia.org/wiki/Laterita
http://www.google.es/url?sa=t&source=web&cd=2&ved=0CCIQFjAB&url=http%3A%2F%2Fdialnet.unirioja.es%2Fservlet%2Ffichero_articulo%3Fcodigo%3D3221721%26orden%3D0&ei=7OzbTfmFNtSt8QOY7KAG&usg=AFQjCNFfCcX-YkeZDd7sYL9VOHOvksn0NQ
http://redalyc.uaemex.mx/redalyc/pdf/644/64407504.pdf
http://www.sagan-gea.org/hojaredsuelo/paginas/10hoja.html
http://es.wikipedia.org/wiki/Suelo
http://es.wikipedia.org/wiki/Rizosfera


LIBROS:

- Willey, Joanne M., Sherwood, Linda M. and Woolverton, Christopher J.
“Microbiología de Prescott, Harley y Klein”. Madrid McGraw Hill Septima
Edición.

Tuberculosis


Por Jesús F. Guijarro Sendra y Sergio Mínguez Pérez
1º Curso de Ciencias Ambientales

La tuberculosis es una de las enfermedades infecciosas más importantes en todo el mundo. En el pasado, llego a ser la causa del 25% de las muertes en Europa, en la actualidad, según datos de la Organización Mundial de la Salud, enferman cada año en torno a 9,4 millones de personas en todo el mundo, de las cuales 1.8 millones acaban muriendo.

El patógeno causante de esta enfermedad es Mycobacterium tuberculosis. Esta micobacteria es aerobia estricta, muy resistente al frio ya la desecación, por el contrario es sensible al calor, a la luz solar y a la luz UV. Su morfología es bacilar. Por otro lado, tiene una tasa de multiplicación muy lenta, dividiéndose cada 16 a 20 horas. Una de sus propiedades más características es que tiene una pared celular que le confiere una gran resistencia a los antibióticos del sistema inmunitario ya que es cerosa y rica en ácido micólico. Es considerada gram positiva.

Esta enfermedad se contagia por vía respiratoria, por inhalar el estornudo de una persona infectada. En la mayoría de los casos, los bacilos son atacados por los glóbulos blancos, se forman unos tubérculos que quedan en estado latente hasta que el sistema inmunológico del huésped no se encuentra en buenas condiciones, entonces los tubérculos pueden romperse y los bacilos salen con propósito de distribuirse a través del torrente sanguíneo. Una vez pasa esto, la enfermedad pasa al llamado estado activo. A partir de aquí empiezan a aparecer algunos síntomas iniciales como: adelgazamiento, falta de apetito, fiebre, sudores nocturnos, etc. Si la enfermedad no se trata, los bacilos pueden llegar a los pulmones y formar granulomas que provocan tos y falta de aliento. Posteriormente y si la enfermedad sigue avanzando, los granulomas pueden romper vasos sanguíneos en los pulmones lo que causa que el infectado estornude sangre. A partir de aquí la enfermedad avanza hasta que el paciente muera.

El tratamiento de la enfermedad se realiza con dos combinaciones de fármacos antituberculosos. Consta de una primera fase de 6 meses y una segunda de 4 meses de medicación. En esta se emplean los siguientes fármacos: isoniacida, rifampicina, etambutol y pirazinamida.

En los últimos años han aparecido cepas de tuberculosis multirresistentes a los fármacos. Esto es debido a que los bacilos tuberculosos poseen mutaciones cromosómicas que confieren resistencia a los fármacos.

En conclusión, la tuberculosis es una infección bacteriana que puede llegar a ser mortal, pero gracias a nuestro sistema inmunitario y a un riguroso tratamiento se puede curar la enfermedad. Sin embargo, la pobreza, la sobrexplotación, la falta de recursos y programas adecuados para el tratamiento de la tuberculosis, han motivado junto con el surgimiento del VIH , han originado que aparezcan nuevos brotes mucho más difíciles de tratar con la actuales terapias antibióticas.

Bibliografía:

Brock. Biología de los Microorganismos,
Wikipedia. Enciclopedia libre,
www.nlm.nih.gov,
www.madrimasd.org,
www.scielo.isciii.es


Legionella pneumophila


Por Ana Belén Iñesta, Antonio J. Navarro, Cristina Mira, Lucas López-Guerrero.
1º Curso grado de Ciencias Ambientales

La Legionella pneumophila es una bacteria ambiental Gram negativa aerobia, con forma de bacilo y posee flagelo para desplazarse. Su nicho natural son aguas superficiales formando parte de su flora bacteriana. Se encuentra en bajas concentraciones, pero en número suficiente para contaminar circuitos de agua artificiales, en los cuales encuentra condiciones favorables para su multiplicación y diseminación. Es capaz de sobrevivir en un amplio intervalo de condiciones físico-químicas, multiplicándose entre 20 ºC y 45 ºC, destruyéndose a 70 ºC, siendo su temperatura óptima de crecimiento de 35ºC a 37 ºC. Se han identificado 42 especies y más de 64 serogrupos pero el serotipo 1 es el responsable del 90% de los casos de legionelosis.

Tiene capacidad de crecer intracelularmente en protozoos y en macrófagos humanos (se reproduce en ellos, en el interior de vacuolas fagocíticas que crecen hasta romper el macrófago y liberarse al exterior para repetir el ciclo). La presencia de amebas en determinados ambientes e instalaciones donde interviene el agua suponen un mecanismo de supervivencia para la Legionella, qué hace más difícil su eliminación.

Se transmite por vía aérea mediante la inhalación de aerosoles o micro gotitas de agua que se mantienen en suspensión y que contengan Legionella en cantidad suficiente. La legionelosis es una enfermedad oportunista, dado que excepcionalmente se presenta en personas sanas en las que puede producir infecciones asintomáticas. La infección por esta bacteria puede cursar en humanos de dos formas, una relativamente venial fiebre de Pontiac y otra con mayor gravedad, enfermedad del legionario o legionelosis. Epidemiologicamente la incidencia de esta infección aumenta con respecto a la edad y es mayor en el sexo masculino. En el tratamiento se utilizan antibióticos de la familia de los macrólidos y quinolonas (inhiben la síntesis proteica de la bacteria). Es una enfermedad de declaración obligatoria, (SIM).

Como acción preventiva, evitar el estancamiento de agua, presencia de sedimentos, corrosión, plásticos, gomas, evitar presencia de microbiota. Control de la temperatura del agua a 50ºC y semanalmente aplicar 70ºC. Los servicios técnicos se realicen con buenas prácticas de higiene. Garantizar la limpieza adecuada de las principales fuentes de multiplicación y dispersión.

Bibliografía.

Harb O S, Gao L Y, Kwaik Y A. From protozoo to mammalian cells: a new paradigm in the cycle of intracellular baceterial pathogens Environ Microbiol
The Lancet – vol 355 – 17 Junio 2000
Rev Chil Infect 2008; 25 (3): 208
Terapeutica Actual. CONN, McGRAW-HIL – INTERAMERICANA DE ESPAÑA
Antibacterianos, D. Dámaso.
Medicina Interna jay H. Stein.
Red Nacional de Vigilancia Epidemiológica

Links.
http://www.cariebbeannewsdigital.com
http://wwwambisalud.es
http://www.kgest.com/guia-tecnica/agua-fria-de-consumo-humano/
http://www.msps.es/ciudadanos/saludAmbLaboral/agenBiologicos/guia.htm
http://www.sp.san.gva.es/sscc/puntosMenu.jsp?CodPor=21&Opcion=SANMS14111&MenuSup=SANMS1411&Nivel=2


Virus de la Inmunodeficiencia Humana (VIH)


Por Rocío Andrés Hernández, Verónica Muñoz Chacón, Laura Palacios Cortés, Juan Vicente Pérez Climent y Carmen Pérez Hernández.
1º Curso de CC Ambientales

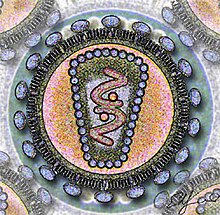
El virus del VIH provoca la enfermedad llamada SIDA. Está compuesto por una envoltura de lípidos y proteínas, éstas a su vez sirven como receptores para unirse a la célula, las gp120. En el interior encontramos la cápside, que engloba las enzimas (proteasa, transcriptasa reversa, integrasa) y el material genético, dos copias idénticas de ARN.

Su ciclo de multiplicación es muy complejo. Al ser un retrovirus es diferente al de los demás virus. Se divide en dos fases: temprana y tardía. La primera engloba las etapas de entrada y descapsidación, retrotranscripción y transporte nuclear e integración. Y en la fase tardía tenemos la transcripción del RNA vírico, procesamiento del mRNA, encapsidación y gemación.

La interacción y transmisión del virus empieza al penetrar en el organismo y llegar a las células linfoides, donde se reproduce. Sólo se transmite por fluidos corporales, por tres vías diferentes: sexual, parenteral (por sangre) y vertical (de madre a hijo).

El VIH destruye linfocitos, macrófagos y células TCD4, esenciales para respuesta inmunitaria, es decir, deja al cuerpo inmunodeprimido, sin defensas. Las células CD4 de la sangre están infectadas en pequeña proporción y las células CD4 de los ganglios linfáticos están infectadas en alta proporción. En la infección se pueden distinguir tres fases: inicial (síntomas en relación a la dosis infectante), intermedia (proliferación a bajo nivel) y sida (empeoramiento del estado general del paciente, debido a las enfermedades oportunistas).

El diagnóstico para el VIH consiste en la prueba de Elisa o Western blot, en la que se inmovilizan las proteínas del virus. Para saber el grado de virulencia se realizan técnicas de PCR. Todas las personas infectadas, a los 3-6 meses tendrán anticuerpos detectables. También hay pruebas que utilizan la saliva y orina. En niños menores de 15 meses la infección suele ser vertical.

Actualmente el virus es incurable ya que no existe ningún tratamiento que acabe con él. Pero existen medicamentos llamados antirretrovirales que frenan el proceso del virus inhibiendo enzimas esenciales.

La enfermedad del sida está considerada una pandemia, debido a que se desarrolla por todo el mundo, especialmente en los países subdesarrollados. Este virus se reconoció como enfermedad en 1981, habiendo 400.000 personas muertas y 56 millones de infectados.

Los métodos más eficaces para prevenirlo es la utilización de profilácticos, inyectables estériles, abstinencia sexual y practicar sexo sólo con un compañero no infectado.


Bibliografía

 http://www.maph49.galeon.com/sida/structure.html
 Libro microbiología Brock.
 es.wikipedia.org/wiki/Pandemia_de_VIH/sida
 http://www.mspsi.gob.es/ciudadanos/enfLesiones/enfTransmisibles/sida/home.htm
 Enciclopedia Larousse.
 Libro Virus patógenos. Editorial: Hélice


Nuevas tecnologías en el tratamiento anaerobio de aguas residuales


Por José Alcázar, Ismael García, Juan Guillermo Mas, Óscar Pina, Daniel Reinosa.
1º curso Grado de Ciencias Ambientales.

En los últimos años se han desarrollado reactores anaerobios para sustituir el proceso de tratamiento aerobio de las aguas residuales, y así permitir aumentar la velocidad de carga orgánica y su aplicabilidad. Los sistemas de segunda generación separan el tiempo de residencia hidráulico del de lodos permitiendo aplicar altas velocidades de carga orgánica y facilitando la utilización de sistemas anaerobios para tratar grandes volúmenes de aguas residuales industriales.

Los reactores UASB (del inglés Upflow Anaerobic Sludge Blanket) son un tipo de biorreactor tubular que operan en régimen continuo y en flujo ascendente, consiste esencialmente en una columna abierta, a través de la cual el líquido residual se pasa a una baja velocidad ascensional, es decir, el afluente entra por la parte inferior del reactor, atraviesa todo el perfil longitudinal, y sale por la parte superior. En el interior los microorganismos responsables de la depuración se agrupan formando biogránulos, y por tanto el tratamiento del agua se realiza cuando ésta se pone en contacto con dichos gránulos. Es por este motivo que la parte fundamental del proceso es la granulación.

El lodo granular se forma por la agregación de microorganismos que cooperan entre si mediante un metabolismo sintrófico que les permite tolerar grandes cargas de materia orgánica para el tratamiento de aguas. Los microorganismos que componen el lodo granular cooperan de la siguiente manera:

1. Las enzimas hidrolíticas producidas por determinados grupos bacterianos presentes en los gránulos (Clostridium, Staphilococcus y Bacteroides) hidrolizan la materia orgánica compleja hasta monómeros solubles. Estas comunidades microbianas están presentes en la parte más externa del gránulo.

2. La siguiente capa está formada por bacterias fermentativas y β-oxidativas que utilizan los monómeros anteriores y los transforman en ácidos orgánicos, alcoholes, cetonas, CO2 e H2.

3. A continuación y de nuevo hacia el interior del gránulo se desarrollan las bacterias acetogénicas que convierten ácidos grasos y alcoholes en acetato, CO2 e H2 (Syntrophobacter wolinii).

4. Finalmente en el centro de los gránulos se encuentran las arqueas metanógenas (Methanoespirillum, Methanosaeta, Methanosarcina, etc..), anaerobios estrictos, que producen metano (CH4) a partir del acetato o bien a partir del CO2 y H2. Este metano es el principal componente del biogás y es utilizado como energía.

El reactor UASB podría reemplazar al sedimentador primario, al digestor anaerobio de fangos, al paso de tratamiento aerobio y al sedimentador secundario de una planta convencional de tratamiento aerobio de aguas residuales.

Las ventajas o desventajas que puede tener el sistema aerobio respecto a un reactor anaerobio deben ser de las primeras cuestiones que debe dilucidarse previa a la instalación de un sistema de tratamiento de aguas residuales, por lo que es necesario saber cuáles son los costes de mantenimiento, el espacio requerido, el equipo necesario, el consumo energético, la eficiencia, etc., para de este modo decidir cuál es el sistema más eficaz y también el más económico.


Bibliografía más relevante:

1. I.Marin, J.L.Sanz, R.Amils 2010. Biotecnología y medioambiente. Ed:
Ephemera. (Cap.10 Tratamiento de aguas residuales)
2. http://www.uasb.org
3. http://www.bvsde.paho.org
4. http://www.fing.edu.uy/imfia/ambiental/reactores_anaerobios.ppt

Microbiología Marina


Por Adrián Orihuela, Bruno Merino, Duna Lujan, Juan Zamora.
1º Curso del grado de CC Ambientales

Los océanos constituyen un extenso ecosistema que contiene una biomasa microbiana equiparable a la de plantas y animales. La actividad de estos microorganismos resulta esencial para los ciclos biogeoquímicos de la biosfera.

En líneas generales, las cifras más elevadas de microorganismos suelen darse en la zona más superficial, disminuyendo, en mayor o menor cantidad, al aumentar la profundidad, aunque sobre los sedimentos suele observarse un incremento. La ausencia o presencia de luz determinan la presencia de microorganismos fotosintéticos (Zonas fóticas donde penetra la luz y zonas afóticas sin luz). La profundidad determina también la mayor o menor presencia de nutrientes.

La presión también aumenta con la profundidad, cada 10 metros es 1 atmósfera de presión. Es por ello que los microorganismos que viven a altas profundidades han adaptado su pared celular para ser más rígida y una membrana citoplasmática más impermeable para resistir la presión a la que están sometidos. Poseen una proteína en su membrana externa, la OmpH, que se trata de una porina o proteína canal adaptada a las grandes presiones, además la membrana plasmática de la célula posee gran cantidad de ácidos grasos insaturados para evitar la gelificación de la misma.

Dividiremos así, por la presión, a microorganismos barotolerantes (0-500 atm), barófilos moderados (crecimiento óptimo 400 atm) y barófilos extremos (+ 600 atm). En las zonas marinas de fuentes hidrotermales, lugares que son volcanicamente activos donde el magma está cerca de la superficie del planeta aparecen microorganismos alimentados por las sustancias químicas disueltas en los fluidos que se emiten, adaptados también a la temperatura del agua que emerge de una fuente hidrotermal a temperaturas que se extienden hasta los 400 °C.

En estos lugares aparecen microorganismos hipertermófilos cuya temperatura óptima de crecimiento se encuentra estrictamente por encima de los 80ºC. La estabilidad de lípidos, proteínas y ADN es
esencial para la vida de estos organismos. En los fondos marinos afóticos la producción primaria de biomasa no se debe a la fotosíntesis, sino a la quimiolitoautotrofia.

En estas zonas hidrotermales existen comunidades de organismos que son capaces de sobrevivir gracias a la existencia de comunidades microbianas quimiolitotrofas. El agua que sale de
los respiraderos hidrotermales es rica en minerales disueltos que son utilizados por estos microorganismos como nutrientes y los transforman en compuestos orgánicos fácilmente utilizables por los organismos superiores.

Riftia pachyptila es un gusano tubícula que vive en las fuentes hidrotermales. Su tubo digestivo se ha modificado en un órgano llamado trofosoma, en el que alberga millones de bacterias simbióticas capaces de transformar los sulfuros en energía y capaces de fijar el carbono procedente de las fuentes hidrotermales. Además las bacterias presentes en este trofosoma evitan también la intoxicación del animal por los sulfuros presentes en estos ambientes, de tal forma que los sulfuros unidos a la hemoglobina del animal son metabolizados dentro del trofosoma por las bacterias presentes en él, oxidando el azufre para producir energía (ATP) y fijando el carbono a través del ciclo de Kalvin sin necesidad de luz. Es una simbiosis entre un invertebrado y microorganismos marinos.

No se ha entregado bibliografía adjunta